
從一把頁岩碎屑,重新看見石炭紀蛇尾的繁盛海床

今日的蛇尾綱(Ophiuroidea),又稱為陽遂足,是一群物種豐富的棘皮動物之一,牠們從熱帶延伸到兩極,從潮間帶一路分布至深海海溝,現生種類約有 2,100 種,是棘皮動物中物種數最多的一綱。蛇尾的身體由許多細小骨片構成,死亡後很容易迅速散開。完整骨架一般只能保存在少數有特殊埋藏條件的地層中,而且體型較大、骨片較厚實的物種較容易進入化石紀錄,小型、纖細與脆弱的物種卻很難被遺留下來。這種保存偏差讓過去所認識的石炭紀晚密西西比世(late Mississippian)蛇尾多樣性很可能只是當時海床群落的一小部分。

美國印第安納州薩爾弗(Sulphur)附近的大克里夫蒂層(Big Clifty Formation)的印第安泉頁岩段(Indian Springs Shale Member),這套晚密西西比世的謝爾普霍夫期(Serpukhovian)地層,由淺灰色頁岩與堅硬石灰岩交互組成。當時的環境是一處受到潮汐影響的淺水緩坡,東北方三角洲持續輸入碎屑沉積物。頁岩中包含了腕足動物(Brachiopoda)、苔蘚蟲(Bryozoa)與魚類牙齒化石,也有海百合、海蕾(Blastoidea)、海膽、海參及多種蛇尾的骨片,是一個相當豐富的海床生物群。
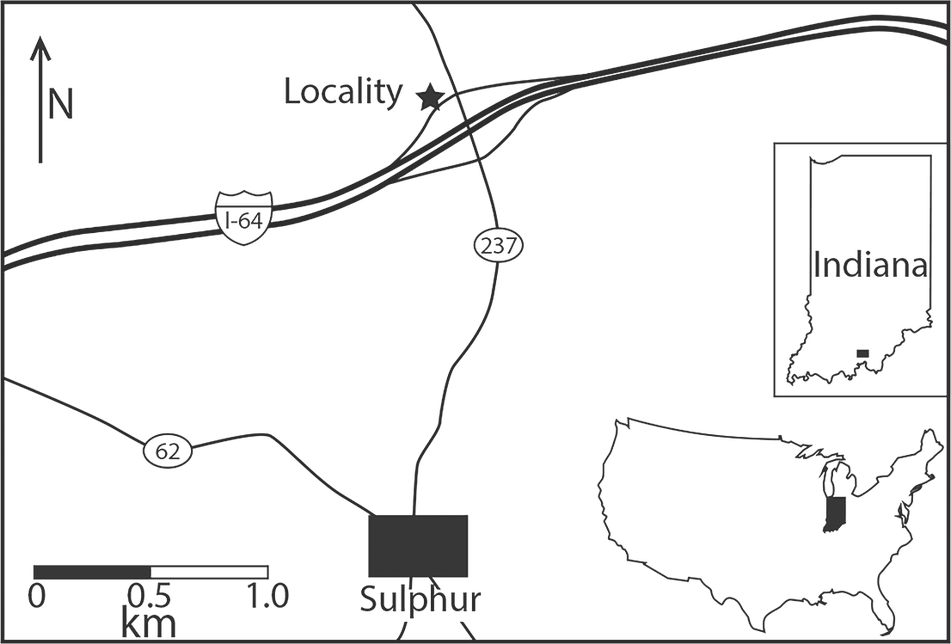

研究者從公路旁的露頭採集約 5 公斤的頁岩,再以微體古生物學(micropaleontology)方法處理。頁岩先浸泡於 3% 的過氧化氫水溶液中過夜,讓岩石崩解並釋出骨骼碎片;接著反覆清洗以去除黏土,乾燥後篩至 125 微米大小。在解剖顯微鏡下,用濕畫筆逐一挑出骨片,再以細針清除骨片表面的殘留沉積物與超音波水浴清潔。最後骨片被固定在鋁製樣品臺上、鍍銀,放入掃描式電子顯微鏡觀察。原本混雜在沉積物中的細小碎片在高倍率影像下顯露出精細的形態差異。
研究者主要觀察其中的側腕板(lateral arm plate),也就是排列在蛇尾腕部左右兩側,原本用來連接腕棘(arm spine)的骨片。不同種類的蛇尾的側腕板在形狀、表面紋理、腕棘連接位置的數量與排列方式上各有差異,是可以辨認身分的特徵之一。研究者也會觀察位於腕部中央構成腕部支撐結構的骨片。整合這些細節,即使找不到完整的蛇尾化石,依舊有機會判斷零散骨片是屬於哪一個屬或物種的蛇尾。這種鑑定方法過去多用於中生代與新生代蛇尾,本研究證明這方法同樣適合分析年代更早的古生代蛇尾化石。

結果遠超過過去對密西西比世蛇尾的想像,單一地點就辨識出 11 種蛇尾,其中 10 種是從未正式描述的新種,數量超過先前全球所有密西西比世蛇尾紀錄的總和。新種包括達基鏟蛇尾(Umerophiura daki)、莉莎層蛇尾(Strataster lisae)、林氏修納蛇尾(Schoenaster limbeckae)、道氏范德洛蛇尾(Vandelooaster douglasi)、華氏叉蛇尾(Furcaster wardi)、麥氏叉蛇尾(Furcaster mccantae)、庫氏叉蛇尾(Furcaster coulombeae)、奧德爾薩爾弗蛇尾(Sulphaster odellettorum)、濟生科維達蛇尾(Covidaster medicus)與顆粒蘇卡蛇尾(Suchaster granulosus);此外還發現無法確定到種的腔蛇尾屬(Cholaster)骨片。
這些種類具有明確的構造差異,達基鏟蛇尾的側腕板寬闊,外形近似手套或球拍,近端帶有圓鈍的柄狀關節構造,遠端邊緣排列著一列向外伸出的薄片狀三角突起。莉莎層蛇尾的側腕板較平坦,輪廓近梯形,內側具有一個與腕椎接合的結節(vertebral articular knob)形似皮帶扣。林氏修納蛇尾擁有厚實的橢圓形側腕板,腹側排列明顯的步帶溝棘關節(ambulacral groove spine articulation)。道氏范德洛蛇尾的側腕板近似扁平槳葉,近端則形成短而鈍的柄狀部分。


同一地層中還出現 3 種叉蛇尾,代表這個屬在當地已有明顯分化。華氏叉蛇尾的側腕板大而厚實且高度拱起,最多有 8 個大型側腕棘關節(lateral arm spine articulation);麥氏叉蛇尾側腕板較低矮,表面孔洞粗大,通常只有 4 個大型側腕棘關節;庫氏叉蛇尾側腕板則小型、薄而脆弱,呈高聳三角形,有多達 8 個較小的側腕棘關節。這些差異能從腕部近端一路追蹤到遠端,無法用個體成長階段解釋,因此被判定為 3 個獨立物種。這也是叉蛇尾在石炭紀首次擁有正式命名的物種紀錄。


另外發現 3 種有現生蛇尾構造的蛇尾化石,奧德爾薩爾弗蛇尾體型很小,側腕板細長且明顯收窄,有大型觸手缺刻及火山口狀的側腕棘關節,被暫定為後蛇尾下綱(Metophiurida)幹群中位置較基部的成員。濟生科維達蛇尾的側腕棘關節具有彼此錯位的背側葉與腹側葉,兩者共同包圍肌肉孔(muscle opening)與神經孔,這是現生棘蛇尾目(Ophiacanthida)成員特有的構造組合。它比此前已知最早的棘蛇尾目化石至少早 7,500 萬年,將這個支系的起源往前推到石炭紀。

顆粒蘇卡蛇尾的側腕板細長、中央收窄,外形近似鱷魚頭,表面有粗糙的網狀結構,腹側還有巨大的缺刻。研究者將它歸入棘蛇尾目,視為目前已知最早的該目成員。它與濟生科維達蛇尾共同顯示現生蛇尾重要支系的早期分化在石炭紀就已經開始。

這批化石包含了始蛇尾目(Stenurida)、原蛇尾科(Protasteridae)、手翼蛇尾科(Cheiropterasteridae)與叉蛇尾科(Furcasteridae)等古老類群,也包含 3 個現生支系的早期成員。晚古生代海床上的蛇尾群落已經存在相當高的分類層級多樣性。這項研究讓我們知道古生物紀錄未必總是完整而醒目的化石,微小骨片也足以改變我們對整個動物類群的認識。
作者:水也佑
參考文獻:
Smith NS et al. (2025). A diverse brittle star (Ophiuroidea: Echinodermata) fauna from the Upper Mississippian (Serpukhovian) of Sulphur, Indiana, USA, and its implications for late Paleozoic brittle star biodiversity. Journal of Paleontology.
Stöhr S et al. (2012). Global Diversity of Brittle Stars (Echinodermata: Ophiuroidea). PLOS One.
喜歡這篇文章嗎? 贊助《演化之聲》可以讓我們持續生產更多有趣的生物文章


留言